

Comment estimer la biomasse globale ?
PDFPeser tous les organismes de la planète est impossible. Les chercheurs combinent donc des mesures locales, des conversions en masse de carbone, des cartes environnementales et des modèles d’extrapolation. Ils n’obtiennent pas un décompte exact, mais un ordre de grandeur assorti d’une incertitude. La télédétection, l’imagerie automatisée et les analyses moléculaires étendent la couverture des observations, sans supprimer les biais liés aux régions et aux organismes peu échantillonnés.
1. Une unité commune pour comparer le vivant
La biomasse désigne la masse des organismes vivants présents à un moment donné. Elle peut être exprimée en masse fraîche, en masse sèche ou en carbone. Pour comparer un arbre, une bactérie et un poisson, les synthèses mondiales utilisent généralement la gigatonne de carbone (Gt C ; 1 Gt C = 10¹⁵ g de carbone). Cette unité évite que les différences de teneur en eau ne faussent les comparaisons. Elle ne renseigne ni sur le nombre d’espèces ou d’individus ni sur la production annuelle (Lire focus Espèces, individus et biomasse).
Une estimation de biomasse décrit un stock de carbone à un moment donné, et non un flux tel que la production primaire annuelle. Ainsi, le phytoplancton forme un petit stock rapidement renouvelé, tandis que les arbres accumulent une biomasse importante pendant des décennies (Lire Le phytoplancton : un petit stock, une immense production) .
Le périmètre doit être précisé. Les estimations portent sur la matière vivante et excluent généralement le bois mort, la litière, la matière organique du sol et le carbone organique dissous. Les virus sont parfois estimés séparément, car leur appartenance au vivant reste discutée. Parasites, symbiotes et microbiotes doivent être traités avec précaution afin d’éviter les doubles comptages.
2. De l’échantillon local à l’estimation mondiale

- Mesurer localement et convertir en carbone. Sur des sites aussi représentatifs que possible, les chercheurs prélèvent ou observent les organismes, puis mesurent une masse, un effectif, un volume, une surface ou une concentration. La masse de carbone est mesurée directement ou calculée à l’aide d’un facteur de conversion : masse moyenne, relation taille-masse, biovolume cellulaire, teneur en carbone de la matière sèche ou équation allométrique.
- Relier les observations à l’environnement. Les densités locales sont associées à des variables disponibles à grande échelle : climat, profondeur, type de sol, végétation, productivité, distance à la côte ou structure forestière.
- Extrapoler. Un modèle estime la densité de biomasse dans les régions non échantillonnées, à une résolution qui dépend de celle des variables environnementales.
- Intégrer. Les densités sont additionnées sur l’ensemble de la surface ou du volume occupé. La convergence de méthodes indépendantes renforce la robustesse du résultat.
Deux démarches se complètent:
- L’approche ascendante extrapole des densités obtenues à partir de mesures réalisées sur des organismes, des prélèvements ou des parcelles.
- L’approche descendante exploite des observations à grande échelle, par exemple des données satellitaires, calibrées par des mesures locales.
Les estimations les plus robustes confrontent des méthodes dont les erreurs ne sont pas entièrement communes. L’incertitude s’accumule à chaque étape : échantillonnage, comptage, conversion en carbone et extrapolation spatiale. Celle du total mondial ne dépend donc pas du seul modèle final.
Lorsque des estimations positives diffèrent surtout par des facteurs multiplicatifs, leur moyenne géométrique, calculée sur une échelle logarithmique, limite le poids d’une valeur exceptionnellement élevée.
3. Des méthodes adaptées aux organismes et aux milieux
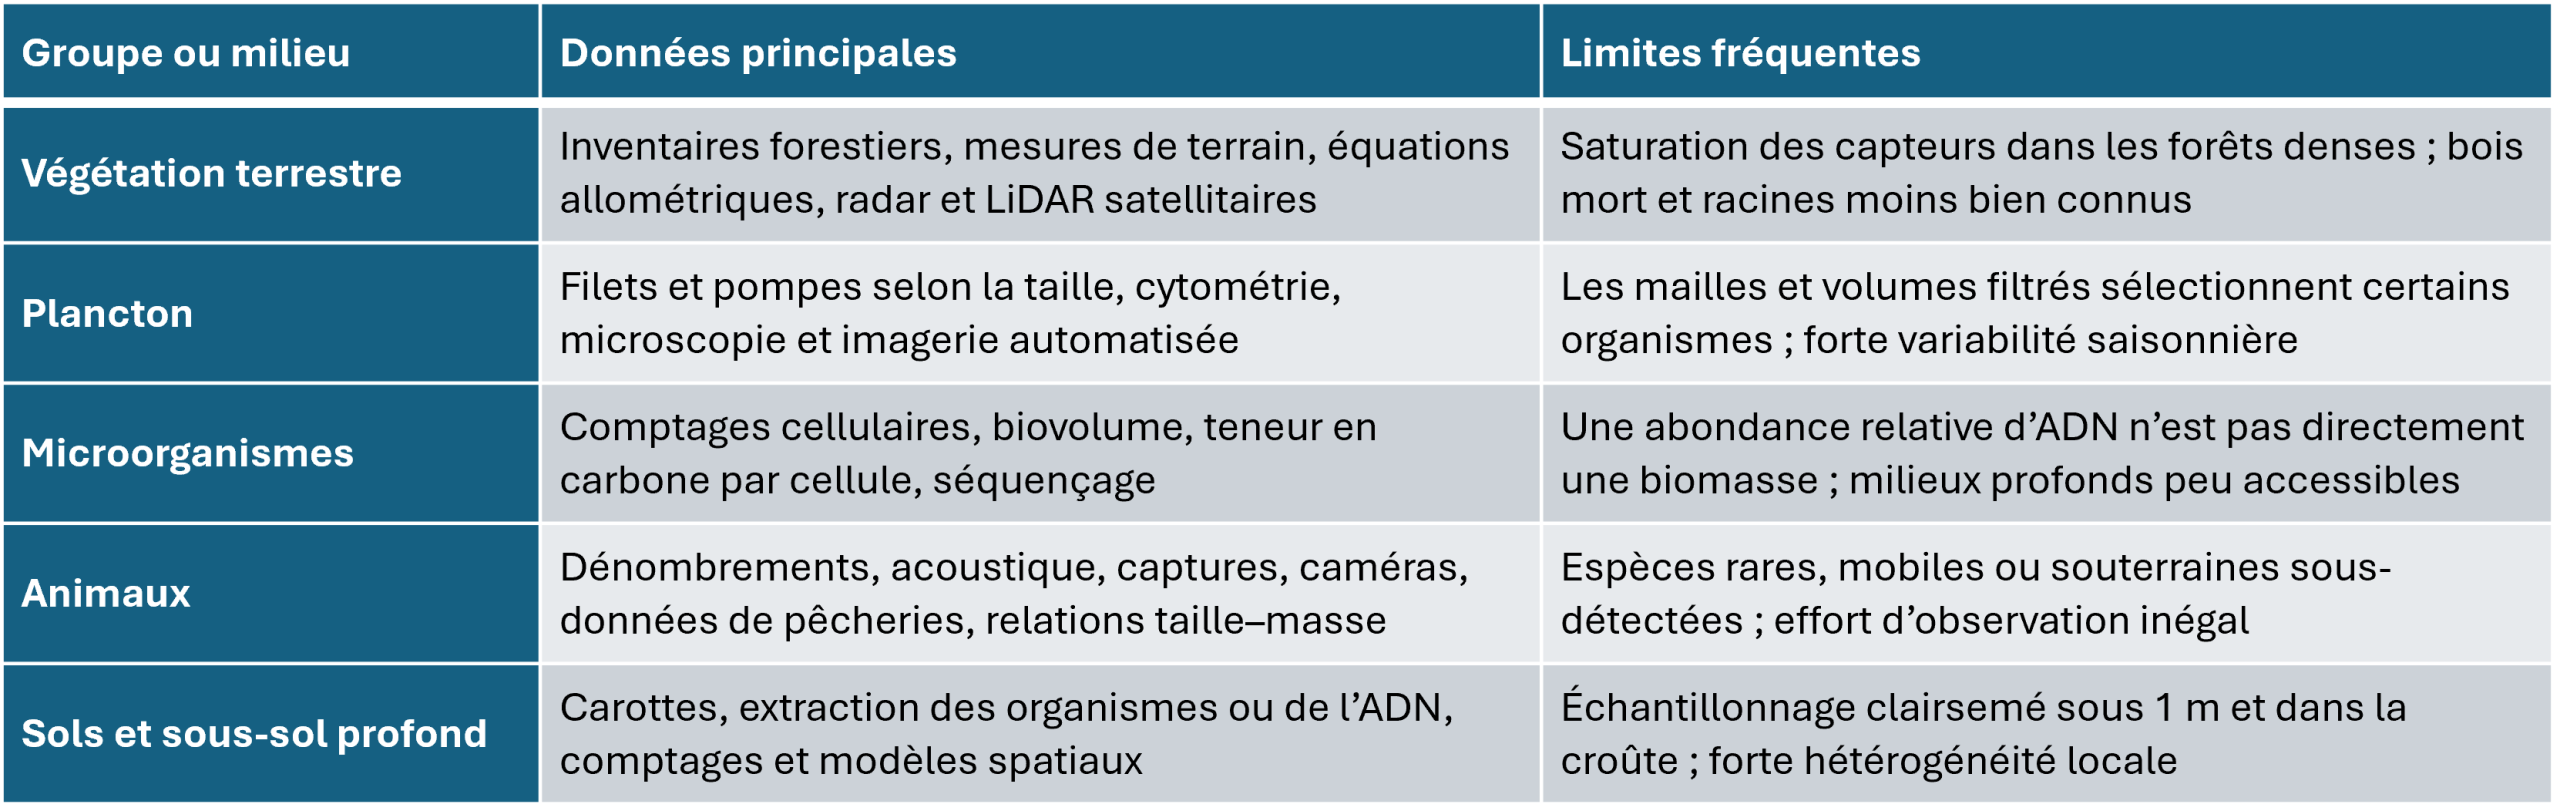
Aucune méthode ne permet d’estimer la biomasse de l’ensemble du vivant. La stratégie dépend de la taille des organismes, de leur habitat, de leur mobilité et de leur détectabilité (Tableau 1). Les techniques récentes étendent la couverture des observations, mais elles ne fournissent une estimation de biomasse qu’après calibration par des mesures directes.
Tableau 1. Principales données utilisées pour estimer la biomasse de différents groupes ou milieux, et limites fréquemment rencontrées. Aucune méthode ne permettant un inventaire exhaustif, les estimations mondiales combinent observations de terrain, télédétection, analyses biologiques et modèles.
3.1. Les plantes terrestres : inventaires, allométrie et télédétection
Les inventaires forestiers compilés par la FAO à partir de rapports nationaux [2] mesurent notamment le diamètre et la hauteur des troncs, et parfois la densité du bois. Des équations allométriques permettent d’en déduire la biomasse aérienne. Les racines, rarement mesurées, sont généralement estimées à partir du rapport entre biomasses souterraine et aérienne.
Ces observations locales servent à calibrer les cartes de télédétection [3]. Les instruments satellitaires ne pèsent pas directement les arbres : le radar et le LiDAR décrivent la hauteur, la densité et la structure du couvert, puis des mesures effectuées sur des parcelles relient ces signaux à la biomasse.
Depuis 2019, la mission GEDI fournit des profils LiDAR de la végétation [4]. Combinés à d’autres images satellitaires, ils améliorent les cartes de biomasse aérienne, mais renseignent moins bien les racines et les forêts très denses. Lancée en avril 2025, la mission Biomass de l’Agence spatiale européenne (ESA, European Space Agency) utilise le premier radar orbital en bande P. Ses grandes longueurs d’onde pénètrent le couvert et permettent de mieux caractériser la biomasse ligneuse. Les données sont librement accessibles depuis le début de 2026 ; les produits dérivés sont annoncés progressivement pour 2026–2027 [5].
3.2. Le plancton et les autres organismes marins

Aucun dispositif ne couvre à lui seul les virus, le phytoplancton, le zooplancton et les grands animaux [6],[7]. Des campagnes comme Tara Oceans associent donc plusieurs techniques d’échantillonnage. La cytométrie en flux et l’imagerie automatisée permettent d’analyser un grand nombre d’organismes, tandis que des algorithmes facilitent leur classification. La couverture des observations s’accroît, mais la calibration des instruments et la validation taxonomique restent indispensables.
3.3. Les microorganismes des sols, des sédiments et du sous-sol
Dans des volumes connus de sol, de sédiment ou de roche, le nombre de cellules est estimé par microscopie, cytométrie ou marqueurs moléculaires. Il est ensuite converti en carbone, puis extrapolé au volume du milieu. La profondeur étudiée, l’hétérogénéité des habitats et la distinction entre cellules vivantes et mortes influencent fortement le résultat [8].
L’ADN environnemental permet également de détecter, dans l’eau, le sol ou les sédiments, des organismes difficiles à observer. Il améliore ainsi les inventaires de diversité et la détection des organismes rares. Toutefois, le nombre de séquences dépend du nombre de copies des gènes ainsi que des méthodes d’extraction et de conservation de l’ADN. Il ne se convertit donc pas directement en nombre d’individus ou en biomasse. Une méta-analyse conclut que cette relation est faible et très incertaine [9]. Les données moléculaires complètent les mesures physiques sans les remplacer.
3.4. Les animaux : des effectifs multipliés par une masse moyenne
Pour les humains, les animaux d’élevage ou certains vertébrés sauvages, les effectifs recensés ou estimés sont combinés à une masse corporelle moyenne et à une teneur en carbone. La structure par âge, les différences de taille et les lacunes des inventaires restent des sources d’incertitude.
Cette démarche a également été appliquée à des groupes difficiles à recenser à l’échelle mondiale, comme les nématodes du sol, les fourmis et les mammifères sauvages [10].
4. Des estimations à interpréter avec prudence
4.1. Les principales sources d’incertitude
- Biais spatial. Les sites faciles d’accès sont surreprésentés, alors que les grands fonds, les couches profondes du sol, les régions polaires et certaines régions tropicales restent peu échantillonnés. Négliger ces milieux conduit à sous-estimer la biomasse ; à l’inverse, s’appuyer surtout sur des sites très riches en organismes tend à la surestimer.
- Biais temporel. Une campagne ponctuelle peut manquer les variations saisonnières, les migrations, les pullulations ou les changements rapides liés aux activités humaines.
- Biais de détection. Les organismes très petits, rares, mobiles, fragiles ou fixés dans un substrat échappent plus facilement aux dispositifs de prélèvement.
- Incertitude de conversion. Une masse moyenne ou une relation entre taille et masse représente imparfaitement des individus dont l’âge, l’état physiologique et l’espèce diffèrent.
- Incertitude du modèle. Une relation observée dans quelques régions peut ne pas rester valable ailleurs. Les cartes environnementales utilisées ont elles-mêmes une résolution limitée et comportent des erreurs.
- Lacunes taxonomiques et doubles comptages. Certaines catégories pratiques, comme les protistes, rassemblent des lignées très différentes. Les parasites, les symbiotes et les microbiotes peuvent être oubliés, mal distingués ou comptés avec leurs hôtes.
4.2. Comment exprimer et lire l’incertitude
Les incertitudes mondiales sont souvent multiplicatives. Ainsi, une estimation de 70 Gt C assortie d’un facteur 10 correspond approximativement à une plage de 7 à 700 Gt C. Bar-On et al. présentent ces plages comme l’équivalent d’un intervalle de confiance à 95 % [1]. Elles associent toutefois des calculs fondés sur les données et, lorsque celles-ci manquent, des comparaisons avec des groupes analogues et des avis d’experts. Elles décrivent donc des valeurs plausibles, sans toujours constituer des intervalles statistiques établis à partir d’échantillons indépendants. Le tableau 2 reprend les résultats de Bar-On et al. par règne. Ce découpage, aujourd’hui discutable, correspond à la résolution taxonomique des données disponibles. Les virus sont estimés séparément, tandis que la biomasse animale résulte de l’addition des principaux phylums [1].
 Tableau 2. Biomasse totale estimée des principaux groupes taxonomiques. Les valeurs, établies à partir d’une synthèse de la littérature, sont arrondies pour tenir compte de leur incertitude ; la somme des lignes détaillées peut donc différer du total d’un groupe. L’incertitude est exprimée par un facteur multiplicatif : elle est forte pour les bactéries (7 à 700 Gt C), mais beaucoup plus faible pour les plantes (environ 375 à 540 Gt C). [D’après Bar-On et al. [1] ; licence CC BY-NC-ND 4.0]
La biomasse des plantes est la mieux contrainte (facteur 1,2), grâce aux inventaires forestiers de la FAO [2] et à la télédétection [3]. Pour les bactéries, les archées et les virus, les incertitudes atteignent un facteur 10 à 20, notamment faute de données sur le sous-sol profond. Les virus — surtout des bactériophages et des virus d’archées — illustrent cette difficulté : les paramètres nécessaires à leur estimation restent rares [1].

Il faut distinguer la variabilité naturelle, l’erreur d’échantillonnage, les incertitudes de conversion ou de modélisation et les biais non quantifiés. Multiplier les prélèvements réduit l’erreur d’échantillonnage, mais ne corrige ni l’absence d’un habitat dans les données ni un facteur de conversion erroné. Une valeur apparemment précise peut donc rester inexacte.
4.3. Des estimations régulièrement révisées
Le recensement de 2018 fournit des ordres de grandeur cohérents, et non une mesure simultanée et définitive de la biosphère : ses données proviennent d’années, de régions et de méthodes différentes. Depuis, des inventaires ont affiné la biomasse des nématodes du sol, des fourmis et des mammifères sauvages [10]. Une compilation mondiale estime ainsi la biomasse des procaryotes du sous-sol continental à 23–31 Gt C, soit 4 à 10 fois moins que les valeurs antérieures [8]. Ce total, archées comprises, reste inférieur aux 70 Gt C attribués aux seules bactéries, mais se situe dans leur plage d’incertitude de 7 à 700 Gt C. Il montre combien la couverture des milieux profonds influe sur les estimations mondiales.
Chaque valeur doit donc rester associée à sa date, à sa méthode, à son périmètre et à son incertitude. Une révision ne traduit pas nécessairement une variation réelle : elle peut résulter d’une meilleure couverture, d’un nouveau facteur de conversion ou d’un modèle plus performant. Suivre une évolution exige des observations répétées et comparables, obtenues selon un protocole stable.
5. Messages à retenir
- La biomasse globale est estimée en combinant des mesures locales, des conversions en carbone et des extrapolations spatiales.
- La masse de carbone permet de comparer des organismes dont la teneur en eau et la taille diffèrent fortement.
- Chaque groupe du vivant exige une méthode adaptée ; aucune technique ne couvre à elle seule toute la biosphère.
- Les satellites, l’imagerie automatisée et l’ADN environnemental améliorent les observations, mais ne remplacent pas les mesures effectuées au sol ou en mer.
- Toute estimation mondiale doit être lue avec sa plage d’incertitude, sa date et ses principales sources de biais.
En savoir plus :
- Matériel supplémentaire à l’article de Bar-On et al. (2018) The biomass distribution on Earth. Nat. Acad. Sci. U.S.A. 115:6506-6511 ; DOI: 10.1073/pnas.1711842115
- Matériel supplémentaire à l’article de Bar-On & Milo (2019) The Biomass Composition of the Oceans: A blueprint of our blue planet, Cell, 179 :1451–1454 ; https://doi.org/10.1016/j.cell.2019.11.018
- Les données utilisées par Bar-On et al. sont accessibles en ligne : https://github.com/milo-lab/biomass_distribution.
Notes et références
Image de couverture. Photo libre de droits via Pixabay
[1] Bar-On Y.M., Phillips R. & Milo R. (2018). The biomass distribution on Earth. Proceedings of the National Academy of Sciences, USA 115, 6506–6511. https://doi.org/10.1073/pnas.1711842115
[2] MacDicken K.G. (2015). Global Forest Resources Assessment 2015: What, why and how? Forest Ecology and Management, 352, 3–8.
[3] Saatchi S.S. et al. (2011). Benchmark map of forest carbon stocks in tropical regions across three continents. Proceedings of the National Academy of Sciences, USA 108, 9899–9904. https://doi.org/10.1073/pnas.1019576108 – Baccini A. et al. (2012). Estimated carbon dioxide emissions from tropical deforestation improved by carbon-density maps. Nature Climate Change, 2, 182–185. https://www.nature.com/articles/nclimate1354 – Thurner M. & Beer C. (2014). Carbon stock and density of northern boreal and temperate forests. Global Ecology and Biogeography, 23, 297–310. https://onlinelibrary.wiley.com/doi/full/10.1111/geb.12125
[4] Dubayah R. et al. (2020). The Global Ecosystem Dynamics Investigation: High-resolution laser ranging of the Earth’s forests and topography. Science of Remote Sensing, 1, 100002. https://doi.org/10.1016/j.srs.2020.100002
[5] ESA (2026). ESA’s Biomass goes live with data now open to all. 26 janvier 2026. https://www.esa.int/Applications/Observing_the_Earth/FutureEO/Biomass/ESA_s_Biomass_goes_live_with_data_now_open_to_all – ESA Earth Online (2026). Biomass Level-2 product release schedule. 26 mars 2026. https://earth.esa.int/eogateway/news/biomass-level-2-product-release-schedule
[6] Bar-On Y.M. & Milo R. (2019). The biomass composition of the oceans: A blueprint of our blue planet. Cell, 179, 1451–1454. https://doi.org/10.1016/j.cell.2019.11.018
[7] de Vargas C. et al. (2015). Eukaryotic plankton diversity in the sunlit ocean. Science, 348, 1261605. https://doi.org/10.1126/science.1261605
[8] Magnabosco C. et al. (2018). The biomass and biodiversity of the continental subsurface. Nature Geoscience, 11, 707–717. https://doi.org/10.1038/s41561-018-0221-6
[9] Lamb P.D. et al. (2019). How quantitative is metabarcoding: A meta-analytical approach. Molecular Ecology, 28, 420–430. https://doi.org/10.1111/mec.14920
[10] van den Hoogen J. et al. (2019). Soil nematode abundance and functional group composition at a global scale. Nature, 572, 194–198. https://doi.org/10.1038/s41586-019-1418-6 – Schultheiss P. et al. (2022). The abundance, biomass, and distribution of ants on Earth. Proceedings of the National Academy of Sciences, USA, 119, e2201550119. https://doi.org/10.1073/pnas.2201550119 – Greenspoon L. et al. (2023). The global biomass of wild mammals. Proceedings of the National Academy of Sciences, USA, 120, e2204892120. https://doi.org/10.1073/pnas.2204892120